
Введение
Базальноклеточный рак кожи (базалиома, БКР) — самое распространенное злокачественное новообразование у представителей европеоидной расы, отличающееся исключительно высокой заболеваемостью в Австралии и Новой Зеландии. Точная причина развития базалиомы не установлена, однако к ее возникновению предрасполагают факторы окружающей среды и наследственная предрасположенность.
В последние годы был достигнут значительный прогресс в понимании молекулярной генетики как наследственных, так и спорадических форм БКР. Нарушение функционирования сигнального пути Hedgehog (HH) и специфические генные мутации существенно повышают риск развития опухоли.
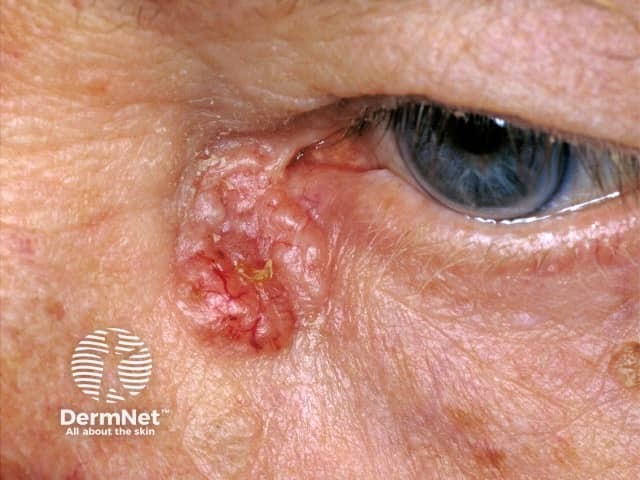
Изъязвленная нодулярно-кистозная базалиома
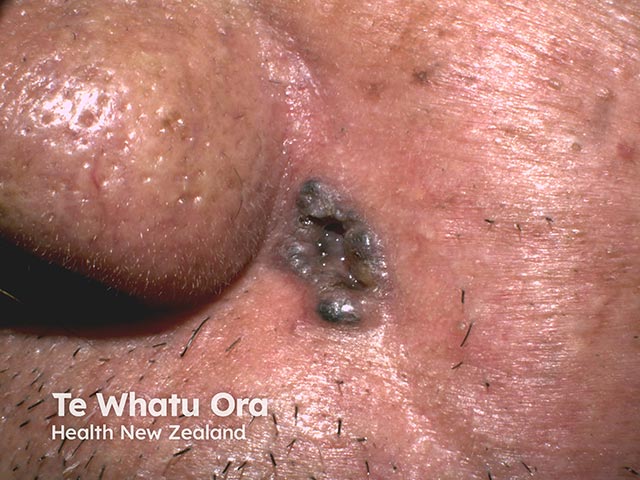
Пигментная базалиома
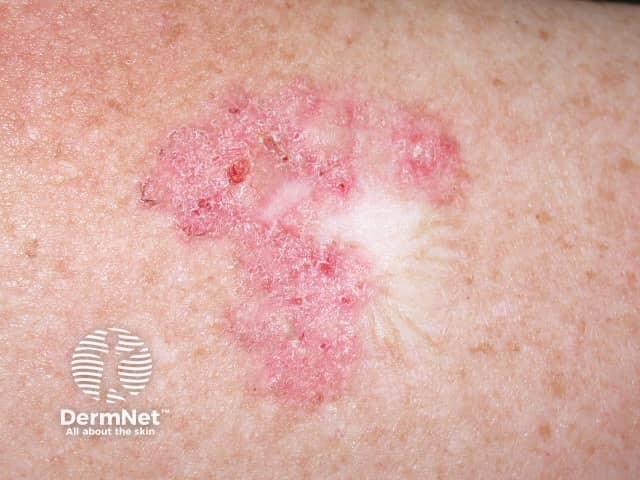
Поверхностная базалиома
Что такое сигнальный путь Hedgehog?
Сигнальный путь Hedgehog (HH-путь) регулирует процессы дифференцировки различных тканей и органов в период эмбриогенеза.
В организме взрослого человека данный каскад продолжает функционировать, контролируя клеточный рост, пролиферацию и дифференцировку.
Дисфункция сигнального пути HH напрямую ассоциирована с онкогенезом у человека, включая развитие базальноклеточного рака.
Как функционирует сигнальный путь HH?
Ген Hedgehog в составе пути HH кодирует внеклеточный лиганд — белок Sonic Hedgehog (SHH). Связываясь с мембранным рецепторным комплексом клетки, SHH запускает внутриклеточный каскад реакций, стимулирующих клеточную пролиферацию.
Рецепторный комплекс клеточной мембраны состоит из двух основных белков:
- Белок Patched-1 (PTCH1) — лиганд-связывающий трансмембранный компонент рецепторного комплекса Hedgehog на клеточной мембране;
- Белок Smoothened (SMO) — белок, отвечающий за передачу онкогенного сигнала Hedgehog нижележащим внутриклеточным эффекторам.
В состоянии покоя (при отсутствии лиганда) PTCH1 удерживает SMO в неактивном состоянии, тем самым блокируя передачу сигнала к нижележащим генам-мишеням.
В активном состоянии:
- Белок SHH связывается с рецептором PTCH1;
- Ингибирующее влияние PTCH1 на белок SMO снимается;
- Путь Hedgehog активируется через каскад регуляторных белков, включая супрессор fused (SUFU), что приводит к ядерной транслокации факторов транскрипции и экспрессии генов-мишеней, регулирующих клеточный цикл.
Что происходит при нарушении работы сигнального пути HH?
Аберрантная активация сигнального пути HH напрямую связана с развитием злокачественных новообразований, в частности базалиомы.
Нормальное функционирование пути HH может нарушаться вследствие мутаций в генах, кодирующих белки PTCH1, PTCH2, SMO или SUFU.
Мутации в гене PTCH1 приводят к утрате способности белка PTCH1 ингибировать SMO.
Конститутивно активный белок SMO индуцирует неконтролируемую клеточную пролиферацию через активацию следующих эффекторов:
- Факторов транскрипции (белков, связывающихся со специфическими последовательностями ДНК и регулирующих перенос генетической информации с ДНК на РНК) GLI1 (онкоген 1, ассоциированный с глиомой; белок типа «цинковый палец») и GLI2;
- Генов клеточного цикла и пролиферации (циклин D, циклин E, myc);
- Факторов неоангиогенеза (стимуляторов роста новых кровеносных сосудов в строме опухоли).
Ключевые гены, повышающие риск развития БКР
Мутации в генах PTCH1, PTCH2, SMO и SUFU предрасполагают к формированию базальноклеточного рака кожи.
Пациенты с синдромом базальноклеточного невуса (синдромом Горлина — Гольтца) рождаются с наследственной герминальной мутацией в одном из аллелей гена PTCH1. Данная мутация формирует аутосомно-доминантный синдром наследственной предрасположенности к опухолям. Оставшийся интактный аллель может подвергнуться соматической мутации под воздействием ультрафиолетового излучения (УФО) в течение жизни, вследствие чего множественные базалиомы развиваются у таких пациентов в молодом возрасте.
- До 70% случаев спорадического БКР у лиц без синдрома Горлина — Гольтца несут соматические мутации в гене PTCH1 («УФ-сигнатурные» мутации, вызванные инсоляцией).
- У 10–20% пациентов со спорадическим БКР выявляются активирующие мутации в гене SMO, ведущие к постоянной автономной передаче пролиферативного сигнала.
- У небольшой доли пациентов обнаруживаются альтерации в гомологе гена PTCH1 — гене PTCH2, а также мутации в гене SUFU.
Другие значимые гены в канцерогенезе БКР
Мутации в гене-супрессоре опухолевого роста TP53 и гене рецептора меланокортина-1 (MC1R) играют фундаментальную роль в формировании спорадического базальноклеточного рака.
Ген TP53
- Ген TP53 кодирует онкосупрессорный белок p53, широко известный как «страж генома».
- Белок p53 распознает генотоксические повреждения и блокирует клеточное деление в фазе G1/S, обеспечивая репарацию ДНК до начала репликации.
- При нерепарабельном повреждении ДНК он индуцирует апоптоз (программируемую гибель клеток), элиминируя потенциально трансформированные злокачественные клоны.
- Инактивирующие мутации в гене TP53 выявляются при широком спектре злокачественных опухолей, включая базалиому.
- В 44–100% случаев БКР определяются мутации гена TP53, индуцированные преимущественно воздействием ультрафиолетового излучения спектра B (UVB).
- Хроническая интоксикация мышьяком является подтвержденным фактором риска БКР; канцерогенез мышьяка связывают с нарушением процессов метилирования ДНК и подавлением экспрессии генов пути p53.
Ген рецептора меланокортина-1 (MC1R)
- Ген MC1R кодирует рецептор меланокортина-1, расположенный на мембране эпидермальных меланоцитов.
- При связывании с α-меланоцитстимулирующим гормоном (α-МСГ) запускается сигнальный путь синтеза меланина в коже и волосяных фолликулах.
- Дикий (немутантный) тип рецептора MC1R стимулирует синтез эумеланина, обеспечивающего фотопротекцию, способность к загару и темный цвет волос.
- Аллельные варианты MC1R, ассоциированные с рыжим цветом волос (RHC-варианты), переключают меланогенез на продукцию феомеланина и формируют характерный RHC-фенотип: светлую кожу (I–II фототипы по Фитцпатрику), рыжие волосы, эфелиды (веснушки) и повышенную чувствительность к меланоме и немеланомным опухолям кожи.
- Многочисленные молекулярно-эпидемиологические исследования подтверждают независимую связь полиморфизмов MC1R с риском развития базалиомы; сочетание светлого фенотипа кожи и вариантов MC1R многократно увеличивает вероятность онкогенеза.
Прочие гены-модификаторы
Полиморфизмы и мутации в следующих генах также могут повышать индивидуальную предрасположенность к спорадическому БКР:
- Гены глутатион-S-трансфераз (ферменты системы глутатиона обеспечивают детоксикацию активных форм кислорода и защиту кератиноцитов от оксидативного стресса);
- Гены ферментов системы цитохрома P450 (CYP) (участвуют в биотрансформации ксенобиотиков, включая канцерогенные компоненты табачного дыма);
- Ген репарации ДНК XRCC3;
- Гены ингибиторов циклин-зависимых киназ CDKN2A и CDKN2B;
- Ген цитокератина базальных кератиноцитов KRT5 (K5);
- Ген BRM (SMARCA2).
Ингибиторы сигнального пути Hedgehog при распространенном БКР
Таргетный препарат висмодегиб (торговое наименование Эриведж™) — низкомолекулярный ингибитор сигнального пути Hedgehog, селективно блокирующий белок SMO. В 2012 году он был одобрен для терапии местнораспространенного и метастатического базальноклеточного рака. В 2015 году еще один ингибитор SMO — сонидегиб — был зарегистрирован по аналогичным показаниям.
В настоящее время ведутся клинические исследования новых таргетных соединений, направленных на иные эффекторные молекулы каскада HH.
Литература
- De Zwaan SE, Haass NK. Genetics of basal cell carcinoma. Australas J Dermatol 2010; 51: 81–92. Journal
- Madan V, Hoban P, Strange RC, et al. Genetics and risk factors for basal cell carcinoma. Br J Dermatol 2006; 154(Suppl 1): 5–7. PubMed
- Bale AE, Yu KP. The hedgehog pathway and basal cell carcinomas. Hum Mol Genet 2001; 10: 757–62. PubMed
- Zhang H, Ping XL, Lee PK, et al. Role of PTCH and p53 genes in early-onset basal cell carcinoma. Am J Pathol 2001; 158: 381–5. PubMed
Материалы DermNet
- Висмодегиб
- Клинические исследования висмодегиба
- Сонидегиб
- Клинические исследования сонидегиба
- Базальноклеточный рак кожи (базалиома)
- Синдром Горлина — Гольтца (синдром базальноклеточного невуса)
- Рак кожи
- Ультрафиолетовое излучение и здоровье человека
Дополнительные ресурсы
- Генетика рака кожи — Национальный институт онкологии (NIH)
- Базальноклеточный рак — Medscape
- Базальноклеточный рак — Британская ассоциация дерматологов (BAD)
- Клинические рекомендации по ведению базальноклеточного рака — Британская ассоциация дерматологов (BAD)