
Что такое иммунная система кожи?
Помимо выполнения роли физического барьера, защищающего организм от воздействий внешней среды, кожа обладает собственной иммунной системой. Она защищает организм от инфекций, неопластических процессов, токсинов и препятствует развитию аутоиммунных реакций.
Иммунную систему кожи также называют лимфоидной тканью, ассоциированной с кожей (SALT — skin-associated lymphoid tissue), которая функционирует в тесной связи с периферическими лимфоидными органами, такими как селезенка и лимфатические узлы.
Иммунная система кожи
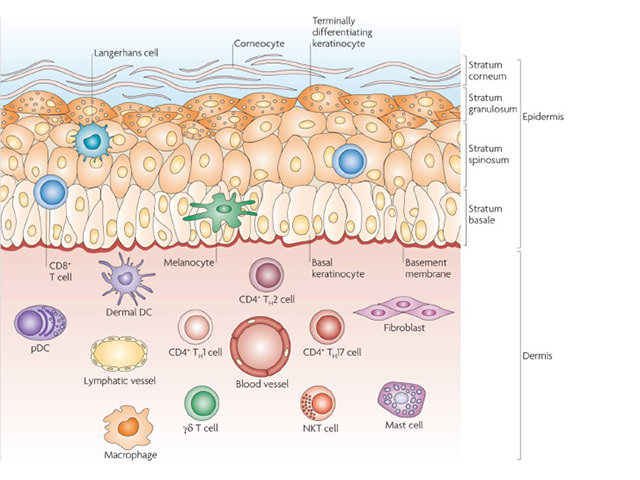
Анатомия кожи и клеточные эффекторы
Иммунные клетки-сторожевые (сентинельные клетки)
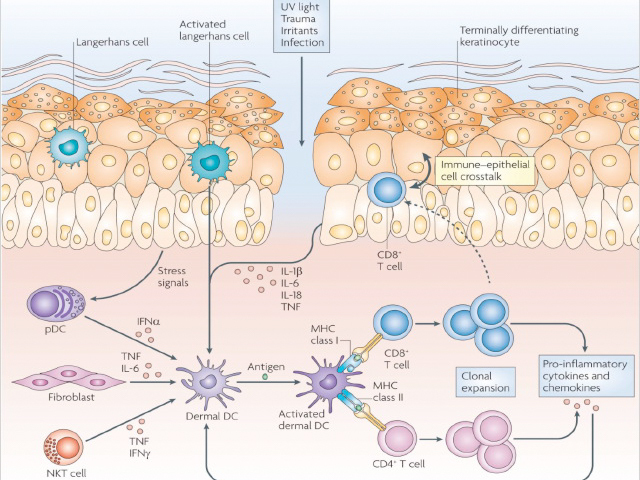
Воспроизведено с разрешения Macmillan Publishers.
Как функционирует иммунная система кожи?
Иммунная система кожи объединяет элементы как врожденного (неспецифического), так и адаптивного (специфического) иммунитета. Иммунокомпетентные клетки локализуются в эпидермисе и дерме.
Ключевыми иммунными клетками эпидермиса являются:
- Эпидермальные дендритные клетки (клетки Лангерганса);
- Кератиноциты (эпителиальные клетки кожи).
Дерма содержит кровеносные и лимфатические сосуды, а также многочисленные популяции иммунных клеток, включая:
- Дермальные дендритные клетки;
- Лимфоциты: Т-клетки, В-клетки, естественные киллеры (NK-клетки);
- Тучные клетки.
Между кожей, дренирующими лимфатическими узлами и системным кровотоком происходит непрерывная рециркуляция (трафик) иммунных клеток. Микробиом кожи также вносит существенный вклад в поддержание гомеостаза кожной иммунной системы.
Что представляет собой врожденный иммунный ответ кожи?
Врожденный иммунный ответ развивается немедленно и не зависит от предварительного формирования иммунологической памяти.
Кератиноциты
Кератиноциты — преобладающая популяция клеток эпидермиса. Они служат первой линией врожденной иммунной защиты от инфекций. На своей поверхности они экспрессируют Toll-подобные рецепторы (TLR) — паттерн-распознающие рецепторы (PRR), которые выявляют высококонсервативные молекулярные структуры патогенов и запускают воспалительный ответ.
Кератиноциты взаимодействуют с остальными компонентами иммунной системы посредством следующих механизмов:
- Секреция антимикробных пептидов (кателицидинов и β-дефензинов);
- Выработка сигнальных цитокинов (например, интерлейкина-1β [ИЛ-1β]);
- Выработка хемокинов, привлекающих другие иммунные клетки в эпидермис;
- Прямая активация сенсибилизированных Т-лимфоцитов и NK-клеток (через главный комплекс гистосовместимости I класса [MHC-I]).
Макрофаги и нейтрофилы
Макрофаги — фагоцитирующие клетки, способные дифференцировать собственные структуры организма («свое») от чужеродных молекул. После фагоцитоза макрофагами внедрившийся патоген уничтожается внутриклеточно. Активированные макрофаги привлекают нейтрофилы, стимулируя их выход из кровеносного русла и миграцию в очаги инфекции или воспаления.
Нейтрофилы первыми реагируют на проникновение инфекционного агента. Они атакуют микроорганизмы непосредственно путем фагоцитоза и дегрануляции цитотоксических веществ.
Дендритные клетки
Эпидермальные и дермальные дендритные клетки участвуют как во врожденном, так и в адаптивном иммунном ответе. В рамках врожденного иммунитета:
- Дендритные клетки экспрессируют TLR, активируемые микробными компонентами;
- Плазмоцитоидные дендритные клетки (пДК) продуцируют значительные количества интерферона-γ (ИФН-γ) в ответ на вирусную инвазию.
Естественные киллеры (NK-клетки)
NK-клетки представляют собой цитотоксические лимфоциты, способные элиминировать инфицированные вирусом и трансформированные (опухолевые) клетки без предварительной презентации антигена и прайминга.
NK-клетки активируются интерферонами и другими цитокинами, выделяемыми макрофагами. NK-клетки экспрессируют ингибирующие рецепторы, распознающие MHC-I, что предотвращает аутоагрессию против собственных неизмененных тканей. Они уничтожают клетки-мишени посредством перфорин-гранзимового пути, индуцируя апоптоз (программируемую гибель клеток).
Тучные клетки
Тучные клетки активируются в ходе аллергических реакций и содержат цитоплазматические гранулы, заполненные преформированными медиаторами воспаления, в частности гистамином. Дегрануляция происходит при связывании специфических триггеров (аллергенов, ядов, IgE-антител и лекарственных средств) с высокоаффинными рецепторами к иммуноглобулину E (FcεRI) на поверхности тучной клетки.
Высвобождение этих медиаторов приводит к повышению сосудистой проницаемости и образованию зудящих волдырей (крапивница). В тяжелых случаях массивная активация тучных клеток может вызвать анафилаксию, проявляющуюся бронхоспазмом, головокружением и синкопальными состояниями.
Эозинофилы
Эозинофилы инфильтрируют кожу при патологических состояниях, таких как паразитарные инвазии и атопический дерматит. Миграция эозинофилов стимулируется связыванием антител (в частности IgE) с белками системы комплемента на поверхности крупных патогенов (гельминтов).
Эозинофилы высвобождают цитотоксические гранулы для уничтожения паразита (компонент врожденного иммунитета), а также стимулируют дифференцировку Т-хелперов 2-го типа (Th2), вовлекаясь в адаптивный иммунный ответ.
Система комплемента
Система комплемента представляет собой ферментативный каскад, состоящий более чем из 20 циркулирующих в плазме белков. При проникновении патогена система последовательно активируется, запуская каскад реакций, направленных на лизис чужеродного микроорганизма.
Продукты активации комплемента также выступают хемоаттрактантами, привлекающими нейтрофилы в очаг инфекции.
Что представляет собой адаптивный иммунный ответ?
Адаптивный иммунный ответ патоген-специфичен и требует больше времени для формирования. Для его реализации необходима дифференцировка антигенспецифических Т-лимфоцитов для точного распознавания антигена и В-клеток для продукции комплементарных антител по принципу «ключ-замок».
Презентация антигена
Дендритные клетки (включая клетки Лангерганса и макрофаги), функционирующие как антигенпрезентирующие клетки (АПК), захватывают антигены и презентируют их незрелым Т-клеткам. Эпидермальные клетки Лангерганса используют свои ветвящиеся отростки (дендриты) для иммунологического надзора, особенно в роговом слое. Связывая патогены через TLR, клетки Лангерганса мигрируют в регионарные лимфатические узлы, где представляют антиген наивным лимфоцитам. Процесс презентации требует интернализации патогена, его внутриклеточного расщепления (процессинга) и экспонирования короткого пептида на поверхности АПК в комплексе с молекулами главного комплекса гистосовместимости (MHC).
Существует два основных класса молекул MHC: MHC-I и MHC-II.
- MHC-I экспрессируется на всех ядросодержащих клетках организма и служит для экспонирования эндогенных пептидов (например, вирусных или опухолевых белков);
- MHC-II экспрессируется преимущественно на профессиональных АПК (дендритных клетках, моноцитах/макрофагах и В-лимфоцитах) и служит для презентации чужеродных экзогенных антигенов.
Т-лимфоциты
В коже присутствуют как резидентные популяции Т-клеток, так и пул рекрутируемых циркулирующих Т-лимфоцитов. Т-клетки не способны распознавать интактные патогены напрямую: Т-клеточный рецептор взаимодействует исключительно с комплексом «пептид-MHC» на поверхности АПК. Полноценная презентация антигена индуцирует дифференцировку наивных Т-клеток в эффекторные субпопуляции: цитотоксические CD8+ Т-лимфоциты и CD4+ Т-хелперы (Th).
Цитотоксические CD8+ Т-лимфоциты взаимодействуют с молекулами MHC-I. Они экспрессируют Fas-лиганд к рецептору апоптоза Fas на мембране клетки-мишени, активируют перфорин-гранзимовый и цитокин-опосредованный сигнальные пути, индуцируя апоптоз инфицированных вирусом или опухолевых клеток.
CD4+ Th-клетки распознают комплексы с MHC-II. Они стимулируют пролиферацию и дифференцировку В-клеток в антителопродуцирующие плазмоциты. При повторном контакте с тем же антигеном Т-клетки памяти обеспечивают быстрый вторичный иммунный ответ за счет активного деления и клональной экспансии.
Популяция Т-хелперов включает субпопуляции Th1, Th2, Th17 и Th22, каждая из которых вырабатывает уникальный цитокиновый профиль и выполняет специфические эффекторные задачи:
Клетки Th1 координируют клеточный иммунный ответ, направленный на уничтожение внутриклеточных патогенов.
- Th1-клетки секретируют ИФН-γ, стимулируют макрофаги и активируют NK-клетки;
- Th1 играют важную роль в иммунопатогенезе псориаза.
Активация Th2 стимулирует В-лимфоциты и продукцию гуморальных факторов.
- Th2-клетки продуцируют интерлейкины ИЛ-4, ИЛ-5, ИЛ-6 и ИЛ-10;
- Они индуцируют активацию и созревание эозинофилов;
- Th2 играют ведущую роль в развитии атопического дерматита (экземы).
Th17-клетки секретируют ИЛ-17 и ИЛ-22, обеспечивая противоинфекционный барьер против бактериальных инфекций и микозов кожи. Клетки Th22 экспрессируют ИЛ-22 и фактор некроза опухоли-альфа (ФНО-α), поддерживающие воспалительный каскад. И Th17-, и Th22-лимфоциты вносят критический вклад в патогенез псориаза. Другие популяции Т-клеток, в частности регуляторные Т-клетки (Treg), осуществляют тонкую модуляцию иммунного ответа, контролируя реактивность к ауто- и чужеродным антигенам и предотвращая аутоиммунные процессы.
В-лимфоциты
В-лимфоциты отвечают за формирование иммунологической памяти к ранее встречавшимся антигенам, гарантируя ускоренный иммунный ответ и длительную протективную защиту. В-клетки дифференцируются в плазматические клетки, продуцирующие антитела (иммуноглобулины), высокоспецифичные к антигену. Основные эффекторные функции антител:
- Нейтрализация — прямое связывание с антигенами патогена, блокирующее его адгезию и инвазию;
- Опсонизация — покрытие поверхности антигена антителами для облегчения последующего захвата фагоцитами;
- Активация системы комплемента.
Для синтеза антител В-клеткам требуются цитокиновые сигналы и костимуляция со стороны Th-лимфоцитов. Этот процесс протекает во вторичных лимфоидных органах (лимфатических узлах):
- В- и Т-лимфоциты взаимодействуют через В-клеточный (BCR) и Т-клеточный рецепторы соответственно при обязательном участии костимулирующих молекул Т-хелперов;
- Пролиферация и соматическая гипермутация В-клеток приводят к переключению классов иммуноглобулинов и выработке IgG, IgA или IgE в зависимости от характера антигенного стимула.
При повторной экспозиции антигена фолликулярными дендритными клетками В-клетки памяти быстро активируются и генерируют пул долгоживущих плазматических клеток, обеспечивая стойкий постинфекционный иммунитет.
Список литературы
- Bologna JL, Jorizzo JL, Schaffer JV. (2012) Dermatology. Philadelphia: Elsevier Saunders, 2012
- Matejuk A. Skin immunity. Arch Immunol Ther Exp (Warsz). 2017 Jun 16. DOI: 10.1007/s00005-017-0477-3. [Epub ahead of print]. PubMed
- Pasparakis M, Haase I, Nestle FO. Mechanisms regulating skin immunity and inflammation. Nat Rev Immunol. 2014 May; 14: 289-301. PubMed
- Yazdi AS, Röcken M, Ghoreschi K. Cutaneous immunology: basics and new concepts. Semin Immunopathol. 2016 Jan; 38 :3-10. PubMed
- Nestle, F. O., Di Meglio, P., Qin, J., & Nickoloff, B. J. (2009). Skin immune sentinels in health and disease. Nature Reviews.Immunology, 9(10), 679-91. doi:http://dx.doi.org.ezproxy.auckland.ac.nz/10.1038/nri2622 (figures). PubMed Central
Материалы на DermNet
Дополнительные ресурсы
- Bite-sized immunology — Британское общество иммунологии (British Society for Immunology)